噬菌体(Bacteriophage)是感染细菌、真菌、放线菌或螺旋体等微生物的病毒。噬菌体具有病毒的基本特性:个体微小,可以通过细菌滤器;无细胞结构,主要由蛋白质构成的衣壳和包含于其中的核酸组成;只能在活的微生物细胞内复制增殖,是一种专性胞内寄生的微生物。
本页面主要目录有关于噬菌体的:历史、分类、生物学性质、感染机制、培养检测、主要应用、前沿技术等介绍

噬菌体(Bacteriophage)是感染细菌、真菌、放线菌或螺旋体等微生物的病毒。噬菌体具有病毒的基本特性:个体微小,可以通过细菌滤器;无细胞结构,主要由蛋白质构成的衣壳和包含于其中的核酸组成;只能在活的微生物细胞内复制增殖,是一种专性胞内寄生的微生物。
本页面主要目录有关于噬菌体的:历史、分类、生物学性质、感染机制、培养检测、主要应用、前沿技术等介绍
Bacteriophage
细菌噬菌体、细菌病毒
1915年
生物学
噬菌体分布极广,凡是有细菌的场所,就可能有相应噬菌体的存在。在人和动物的排泄物或其污染的井水、河水中,常含有肠道细菌的噬菌体。在土壤中,也可找到土壤细菌的噬菌体。
噬菌体有严格的宿主特异性,只寄居在易感宿主菌体内并可裂解细菌,故流行病学可利用噬菌体进行细菌的鉴定与分型,以追查感染源。临床上有时利用噬菌体作为某些局部感染的辅助治疗。另外,噬菌体由于基因数目较少,增殖速度较快又易于培养,在分子生物学中被作为外源基因的载体,用于研究核酸的复制、转录以及表达等重要理论问题,因此噬菌体已成为分子生物学的重要研究工具。
1898年,俄国学者伽马列亚用燕溜水处理炭疽杆菌时,首先发现一种能使该菌新鲜培养液溶解的物质。1915年,英国细菌学家F.W.特沃特在检查牛痘苗杂菌时,发现在琼脂平扳培养基上的白色葡萄球菌菌落变成玻璃样透明,移补于肉汤后,发现有菌体裂解现象,并认为是一种自溶酶的作用。1917年,加拿大医学微生物学家F.德赫雷尔报导了他的详细实验,证明用恢复期痢疾病人粪便培养的肉汤,通过细菌滤过器的透明滤液,有裂解新鲜痢疾杆菌的作用、继续移种能增强裂解的效力,并命名为噬菌休,指出它是一种寄生于细菌,有繁殖能力的生活物质。从1915年,第一篇关于噬菌体的文章出现,至今的70多年历史中,噬菌体己在分子生物学的舞台上起了重要的作用。1952年,美国遗传学家莱德伯格发现通过噬菌体的传导,可以实现不同细菌间的基因重组现象。1957年,法国遗传学家本滋尔以T4噬菌体作为研究材料,分析了基因内部的精细结构,提出了顺反子学说。
有关噬菌体增殖的详细研究开始于20世纪40年代,由麦克斯·德尔布鲁克(Max Delbriick)、萨尔瓦多·卢里亚(Salvador Luria)和阿尔弗雷德·赫尔希(Alfred D.Hershey)发起,他们三人联手组建了一个非正式协会,名叫“美国菌体小组”(American Phage Group)。通过这三人的学生以及其他追随者的努力,他们基本阐明了噬菌体增殖的细节。研究人员还把在研究过程中用到的大肠杆菌噬菌体依次命名为T1、T2、T3、T4、T5、T6及T7。
在得知噬菌体的主要成分是质量相当的DNA和蛋白质之后,1952年,阿尔弗雷德·赫尔希和玛莎·蔡斯(Martha Chase着手以“标记的方式确定了这两种成分在T2菌体中的功能。所谓的“标记”是指在这两种成分的分子中混入具有放射性的原子,然后依次对其进行定向追踪。赫尔希和蔡斯当时知道的是,蛋白质中有硫元素但没有磷元素,而 DNA 富含磷元素但没有硫元素。于是,他们先是培育了一批含有放射性硫元素(35s)的曝菌体,标记硫元素相当于标记蛋白质;而后他们培养了另一批含有放射性磷元素(P)的菌体,这相当于标记了它们的DNA。
温和噬菌体感染寄主菌后不立即增殖,而是将其基因组整合到寄主菌的孩酸中,并随寄主菌核酸的复制而复制,且伴随寄主菌分裂而分配到两个子代细菌基因中,即为溶原状态。整合在寄主菌核酸中的噬菌体基因组称为原噬菌体(或前噬菌体),染色体上带有温和噬菌体基因组的细菌称为溶原性细菌。
噬菌体在宿主菌内增殖,包括吸附、穿入、生物合成、成熟释放等步骤,可增殖大量的子代噬菌体,导致细菌的裂解死亡。这类能裂解细菌的噬菌体为毒性噬菌体,整个过程为溶菌周期。
已知菌体蛋白质衣壳有三种基本形态:蛋白质亚单位排列呈二十面体对称型,称为球形噪菌体;双对称型,即头部为二十面体对称,尾部为螺旋对称,称为蜗蚂形赚菌体;蛋白质亚单位呈螺旋对称排列成中空柱状,称为丝状噬菌体。
1、2、3三群头部是现六角晶柱形,由蛋白质组成其外壳,内含核酸,尾部由一-个中空的管状体尾髓和可收缩的蛋白质尾鞘所组成。与头部相接处呈现收部分称为颈部。尾端具有六边形的基片,其上生出六个刺突,并缠绕着六根细长的尾丝。4、5 两群星球形,一般在 20~60nm,经过染色处理和高度放大,可观察到球形粒子星 20 面体的结构。
六类噬菌体的形态特征形态特征 | 核酸类型 | 噬菌体举例 | 宿主种类 |
六角型头部及伸缩性长尾 | dsDNA | T2、T4、T6 | 大肠埃希菌,假单胞菌,枯草杆菌,抄门菌,黏球菌 |
六角型头部及非伸缩性长尾 | dsDNA | λ、T1、T5 | 大肠埃希菌,棒杆菌,放线菌 |
六角型头部及非伸缩性短尾 | dsDNA | T3、T7 | 大肠埃希菌,假单胞菌,枯草杆菌,沙门菌 |
无尾、六角型头部的顶点衣壳粒大 | ssDNA | ΦX174 | 大肠埃希菌,沙门菌 |
无尾、六角型头部的顶点衣壳粒小 | ssDNA | R17、雄性噬菌体(f2,MS2,Qβ) | 大肠埃希菌,假单胞菌,柄细菌 |
无尾、纤维状 | ssDNA | M13、Pf1、V6、雄性噬菌体(fd,f1) | 大肠埃希菌,假单胞菌 |
噬菌体主要由脱氧核糖核酸和核糖核酸及其等量的蛋白质组成。其外膜与尾部主要由蛋白质构成,头部主要足脱氧核糖核酸,尾鞘由一种收缩性蛋白组成,含有ATP和脱氧ATP,这些高能物质水解寸提供收缩的能源。尾部的顶端含有类似溶菌酶类的酶。当噬菌体吸附在细菌以后,比溶菌酶更能把细菌细胞壁的粘多糖层溶穿成孔,从而尾芯穿通细胞壁,延长型把核酸注入细菌体中。
噬菌体的头部含行双链DNA,分子最达1.2X10,共长度约为细菌染色体的1/30。按体积比较,噬菌体的头部仪为细菌的百分之一以下。噬菌体头部内的DNA呈螺旋状折将在其中。这里除了含有微量的叫做内部蛋白质的成分之外,不含DNA之外的成分。在普通生物细胞里,功能蛋白质中都含有酶类,但所有噬菌体几乎都不含有酶,离开宿主细胞的噬菌体粒子本身不但不具有代谢功能,而且不显示生物活性。
噬菌体具有抗原性,能够刺激机体产生特异性抗体。该抗体能抑制相应噬菌体侵袭宿主菌,但对已吸附或已进入宿主菌的噬菌体不起作用。
噬菌体对理化因素的抵抗力比一般细菌繁殖体强,加热70°C30分钟仍不失活,也能耐受低温。大多数噬菌体能抵抗乙醚、三氯甲烷和乙醇,在5g/L升汞和5g/L苯酚中,经3~7天不丧失活性,而在过饱和氯化钙溶液中,保持数年不失活。但对紫外线和X射线敏感,一般经紫外线照射10~15分钟即失去活性。
通常把毒性噬菌体看作噬菌体的正常表现。毒性噬菌体的入侵增殖一般包括吸附、侵入、生物合成、装配以及释放五个阶段。
吸附
噬菌体并非任意地吸附于宿主细胞表面而是附着于被称为受体位点(Reception sites)的特定细胞表面结构上,这些受体的性质随噬菌体而异;细胞壁脂多糖和蛋白质、磷壁质、鞭毛和菌毛均可作噬菌体受体。大肠杆菌 T-偶数噬菌体用细胞壁脂多糖或蛋白质作受体,受体性质的变化至少部分地关系噬菌体宿主选择性。
吸附是噬菌体与细菌表面受体发生特异性结合的过程,其特异性取决于噬菌体蛋白与宿主菌表面受体分子结构的互补性。只要有细菌具有特异性受体,噬菌体都能吸附,但噬菌体不能进人死亡的宿主菌。T-4 菌体尾部的一个尾丝接触受体位点时,菌体吸附过程开始在更多的尾丝接触后,基片便固定在细胞表面。吸附过程是受静电、pH 和离子的影响。
侵入
噬菌体吸附在细菌细胞壁的受点上以后,产生少量溶菌酶溶解细胞壁,然后尾鞘收缩,核酸通过尾髓注入细菌细胞中,蛋白质壳体留在外面失去作用。噬菌体从吸附到侵人的时间间隔很短,只有几秒或几分钟。
生物合成
噬菌体核酸进入菌细胞后经过一定时间的隐蔽期,则噬菌体迅速繁殖,DNA不断的复制,且不断的合成噬菌体蛋白质。当噬菌体的DNA和蛋白质分别合成后,则装配为完整的噬菌体。
装配与释放
T4菌体的装配过程是一个极为复杂的自我装配的过程。这一过程包括4个完全独立的亚装配途径:无尾丝的尾部装配;头部的装配;尾部与头部自发结合;单独装配的尾丝与前已装配好的颗粒相连。以上各个装配步骤通过一系列绝对有序的装配反应进行,其中每一种结构蛋白在装配时都发生了构型的改变,为后一种蛋白质的结合提供了可识别位点,而且前壳体的装配还需脚手架蛋白的参与,这些蛋白质在结构完成后被除去。包括T4噬菌体单链DNA 菌体等大多数菌体都是以裂解细胞方式释放,丝杆菌体不杀死细胞,子代毒粒以分泌方式不断从受染细胞中释放,这是一种病毒与宿主细菌的共生关系。
有些噬菌体侵入寄主细菌后不会像毒性噬菌体那样发展,而是它们的核酸和寄主细胞同步复制,寄主细胞不裂解,这类噬菌体称为温和噬菌体。
自发裂解
多数溶原性细菌不发生裂解现象,能够正常繁殖,并将原噬菌体传至子代菌体中。只有极少数(发生率为 10左右) 溶原性细菌 (如杆菌、大肠埃希菌、假单胞菌、棒状杆菌、沙门菌、葡萄球菌、弧菌、链球菌、变形杆菌、乳杆菌等) 的原噬菌体脱离寄主菌的 DNA,并在寄主菌体内增殖产生成熟噬菌体,导致寄主菌细胞裂解,这种现象称为溶原性细菌的自发裂解。也就是说极少数溶原性细菌中的温和噬菌体变成了毒性噬菌体。
诱发裂解
用低剂量的紫外线照射处理,或用X 线、丝裂霉素 C、氮芥等其他理化因素处理,能够诱发大部分甚至全部溶原性细菌大量裂解,释放出嵘菌体粒子,这种现象称为诱发裂解。因此,温和噬菌体既有溶原周期,又有溶菌周期,而毒性噬菌体只有溶菌周期。
复愈
有极少数溶原性细菌其中的原噬菌体消失了,成为非溶原性细菌,此时既不会发生自发裂解现象,也不会发生诱发裂解现象,称为溶原性细菌的复愈或非溶原化。温和噬菌体侵入寄主细胞后可能发生的侵染过程如下:

在液体培养基中,噬菌体裂解宿主菌可使混浊菌液变澄清。而在固体培养基上,将适量的噬菌体和宿主菌液混合接种培养后,培养基表面可出现透亮的溶菌空斑,每个空斑系由一个噬菌体复制增殖并裂解宿主菌后形成的,称为噬斑(plaque),不同噪菌体噬斑的形态与大小不尽相同。通过噬斑计数,可测知一定体积内的噬斑形成单位(plaque forming units,PFU)数目,即噬菌体的数量。
基因工程研究中最常用的噬菌体载体是λ噬菌体载体。λ噬菌体是研究最为详尽的一种以大肠杆菌为宿主的双链DNA噬菌体,是一种中等大小的噬菌体。λ噬菌体的基因组DNA全长为48.5kb,在噬菌体颗粒内ADNA呈线状双链分子,两端各有长12 bp的突出黏性末端,进入宿主细胞后,在连接酶作用下,噬菌体DNA会形成共价闭合环状分子。
λ噬菌体的基因组DNA至少编码61个基因,功能相近的基因在基因组中聚集在一起。λ噬菌体的基因组共分为3个区域,第一个区的基因与噬菌体DNA的包装和颗粒的形成有关,第二个区位于中间,主要与溶原生长和基因的整合有关,第三个区主要与噬菌体的复制和裂解生长有关。λ噬菌体的基因组中,约只有一半基因参与噬菌体的生命周期,属于噬菌体生存必需的基因,另一半基因为非必需基因,也就是说它们可以被外源基因取代,这些基因被取代后并不影响噬菌体的生命功能。在λ噬菌体的基因组DNA中,至少有56种限制酶位点,利用这些酶切位点可将外源基因取代非必需基因形成重组噬菌体DNA,能随着寄主细胞一起复制和增殖,这也是λ噬菌体能够被开发成为基因克隆载体的一个前提条件。
由于噬菌体裂解细菌有种的特异性,故可用于细菌的鉴定。如利用已知的噬菌体鉴定未知的霍乱弧菌、枯草芽胞杆菌等。噬菌体裂解细菌又有型特异性,所以又可用噬菌体对某一种细菌分型,即该菌的噬菌体型。如利用伤寒沙门菌Vi噬菌体已将有Vi抗原的伤寒沙门菌分为96个噬菌体型。利用金黄色葡萄球菌噬菌体将金黄色葡萄球菌分为4个群若干个型。细菌的噬菌体分型在流行病学调查上对追查和分析细菌感染的传染源有很大帮助。
噬菌体在自然界中分布广泛,凡有细菌的地方,如污水、土壤、人和动物的排泄物等都可能有噬菌体。所以,从标本中检出某种噬菌体常提示该标本中曾有相应的细菌存在。应用噬菌体必须在活的敏感细菌内才能增殖这一特性,如将检测标本与一定数量已知噬菌体共同培养,如噬菌体明显增加时,虽然细菌培养阴性,也提示该标本中有相应的细菌存在。
由于噬菌体对细菌的感染具有种的特异性,不像使用抗生素那样容易造成菌群失调或耐药,细菌对噬菌体产生耐受的可能性较小。因此可成为新的抗菌物质,尤其对金黄色葡萄球菌、铜绿假单胞菌等这些容易产生耐药性的细菌应用价值更大,有着较好的前景。
噬菌体展示技术是使用噬菌体研究蛋白与蛋白、蛋白与肽、蛋白与核酸互作,以了解遗传信息与其编码蛋白之间的关系的一种技术。此技术是将外源蛋白或多肽的DNA序列插入到噬菌体外壳蛋白结构基因的适当位置,使其阅读框正确,且不影响其他外壳蛋白正常功能,使插入的外源基因随外壳蛋白的表达而表达;同时,此外源融合蛋白随噬菌体的重新组装而展示在噬菌体表面,被展示的多肽或蛋白可以保持相对独立的空间结构和生物活性,以利于靶分子的识别和结合,以检测噬菌体表面展示蛋白与其他分子间的互作,从而能找到基因型与表型的联系。噬菌体展示肽库与固相上的靶分子经过一定时间孵育后,洗去未结合的游离噬菌体,然后以竞争受体或酸洗脱下与靶分子结合吸附的噬菌体,这样洗脱下的噬菌体感染宿主细胞后经繁殖扩增,进行下一轮洗脱,经过3~5轮的"吸附-洗脱-扩增"后,与靶分子特异结合的噬菌体得到高度富集。所得的噬菌体制剂可用来做进一步富集有期望结合特性的目标噬菌体。这使得大的蛋白质文库在称为体外选择中能够筛选和扩增,相当于自然选择。
新亚洲娱乐(英文名:ASIA ENTERTAINMENT GROUP LIMITED,全称:新亚洲娱乐联盟集团有限公司)是一家以从事戏剧制作人及杂项戏剧服务为主的企业,成立于1999年,位于香港特别行政区。旗下分公司包括虎威艺能创作有限公司(TGS HK)、稻草人娱乐创作社(Scarecrow Entertainment)、虎威王朝音乐创作股份有限公司(TGS Music)、虎威活力娱乐传播有限公司(TGS Taiwan)、AK Entertainment(Korea)以及AEG Korea等。
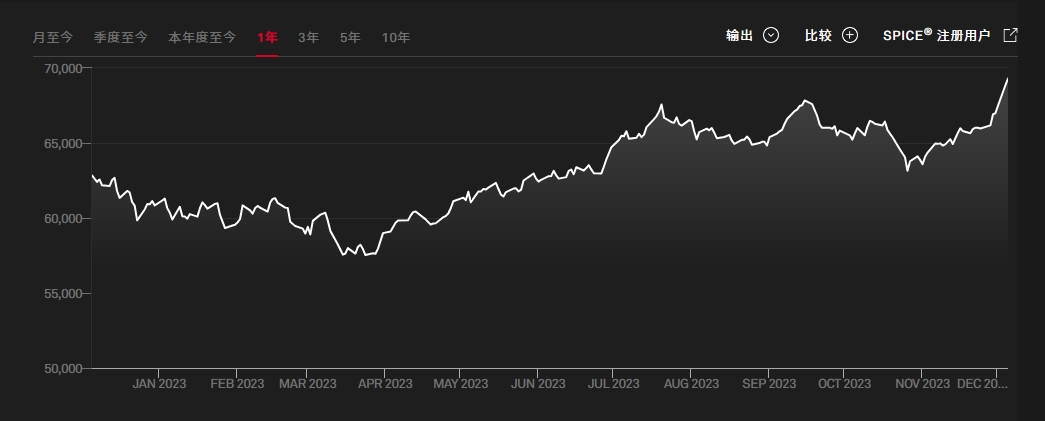
印度孟买SENSEX30指数(又称孟买敏感指数)为印度最被广泛使用的指数,为投资印度的重要参考指标,是由孟买证券交易所发行。由于各类媒体提到的“印度股市”,实际上都是孟买股票交易所,因此,该交易所的SENSEX-30指数几乎成了印度股市的代名词。